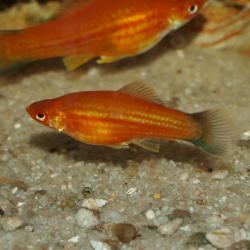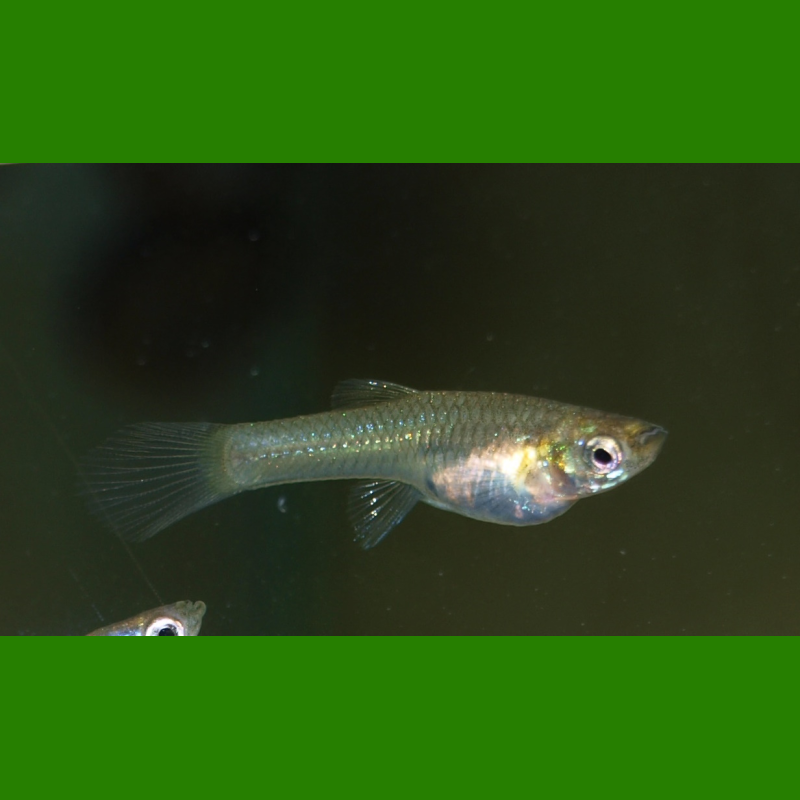

Poecilia wingei "Cumana"
Origine: Lagons de Campoma et Buena Vista au Venezuela. *Poecilia wingei* a été décrit à partir de spécimens provenant de plusieurs cours d'eau côtiers du nord du Venezuela, au sein du système hydrographique des lagunes de Campoma et de Buena Vista — désigné par certains auteurs sous le nom de Río Campoma (par ex. Carvajal 1972) et par d'autres sous celui de Río Casanay (par ex. Salazar et Arcia-Barreto 2020) — qui appartient au bassin versant de la mer des Caraïbes (Rodríguez-Olarte et al. 2009). Par ailleurs, sa présence a également été signalée dans d'autres bassins côtiers adjacents à ce système hydrographique, comme nous le décrivons dans cette section.
Selon la description de l'espèce (Poeser et al. 2005), l'holotype (ZMA 123.704, mâle) provient du Río Campoma, entre les lagunes de Campoma et de Buena Vista. Nous situons ce point aux coordonnées 10°32'23'' N, 64°31'54'' O, à une altitude de 7 m. L'allotype (ZMA 123,705, femelle) et un lot de paratypes (ZMA 123,636, 18 spécimens) ont été capturés dans la même localité que l'holotype en 2002. Cinq autres localités (que nous situons dans la présente évaluation), correspondant à cinq lots de paratypes (ZMA 123,637, 67 spécimens ; ZMA 123,638, 25 spécimens ; ZMA 123,645, 7 spécimens ; ZMA 123,647, 38 spécimens ; et ZMA 123,648, 10 spécimens), soit un total de 147 spécimens, ont été échantillonnées respectivement dans : 1) un canal d'irrigation, à 2 et 3 km au nord de la ville de Cariaco (10º31'40''N, 64º32'37''O, 9 m d'altitude) ; 2) de petits fossés parallèles à la route, à 2,5 km à l'ouest de la ville de Carupano (10º39'42''N, 63º17'08''O, 5 m d'altitude) ; 3) une lagune côtière à 3 km à l'ouest de Carupano (10º39'53''N, 63º18'11''O, 9 m d'altitude) ; et 4) le Río Casanay, dans la localité de Guarapiche (10º30'31''N, 63º23'14''O, 70 m d'altitude). D'après notre analyse, la localité 1 correspond à des affluents du Río Campoma ; les localités 2 et 3 correspondent à l'écosystème marin côtier (estuaire) appelé Playa Grande (complexe de la lagune El Copey) ; et la localité 4 (Río Casanay) appartient au bassin du Río Campoma, puisqu'il s'agit d'un affluent de la lagune Buena Vista (système Río Campoma-Casanay). La Laguna El Copey est alimentée par de petits affluents temporaires ou intermittents, dont le plus important est la Quebrada Playa Grande. Par ailleurs, Poeser et al. (2005) ont sélectionné un lot de paratypes (UMMZ 158715, 30 spécimens) capturés en 1939 dans un cours d'eau situé à 35 km à l'ouest de Carupano. Cela pourrait correspondre à un affluent du versant nord du bassin du Río Campoma-Casanay.
Il convient de noter que Poeser et al. (2005) incluent à tort tous les sites où ils ont capturé ou étudié des spécimens de *Poecilia wingei* dans la péninsule de Paria. Cette information est également citée récemment dans d'autres ouvrages, tels que des catalogues systématiques et des bases de données internationales (Huber 2019, Fricke et al. 2020), voire dans des inventaires régionaux (Salazar et al. 2019). Or, cette péninsule se trouve à plus de 80 km à l'est de la région du système hydrographique Campoma-Casanay (et des lagunes de Campoma et Buena Vista), et à plus de 50 km du complexe Laguna Playa Grande - El Copey. En réalité, le système hydrographique du Río Campoma-Casanay est situé entre le versant sud du massif montagneux de la péninsule d'Araya et le versant nord-est du massif de Turimiquire (chaîne côtière orientale), tandis que la Laguna Playa Grande - El Copey se trouve au nord du Cerro Campeare et le Río Casanay au sud de ce système montagneux.
Plus tard, au sein du système hydrographique du Río Campoma-Casanay, Bonilla et al. (2010) ont signalé la présence de *Poecilia wingei* dans au moins trois localités que nous prenons en compte dans la présente évaluation. Il s'agit des lagunes de Buena Vista (10º31'26''N, 63º 28'52''O, 5 m d'altitude) et de Campoma (10º31'00''N, 63º 26'29''O, 2 m d'altitude), ainsi que de leurs affluents respectifs : le Río Casanay (10º30'49''N, 63º 20'49''O, 133 m d'altitude), le Río Grande et la Quebrada Seca (10º23'19''N, 63º 37'54''O, 163 m d'altitude). Ces deux derniers cours d'eau sont des affluents du Río Carinicuao, qui se jette dans le Río Cariaco ; ce dernier déverse ensuite ses eaux dans le cours inférieur du Río Campoma, en amont de son embouchure et de son estuaire dans le golfe de Cariaco. Cette espèce est également signalée dans le Río Casanay par Salazar et Arcia-Barreto (2020), sans précision de localisation exacte. Auparavant, Carvajal (1972) avait recensé des populations de *Poecilia reticulata* dans les lagunes de Buena Vista et de Campoma, populations qui pourraient en réalité correspondre à *P. wingei*.
Comme l'indique Endler (2011), *Poecilia wingei* avait été signalé, avant même sa description, dans d'autres localités situées à l'ouest de la localité type actuelle. Ainsi, dès 1975, Endler l'a recensé dans l'écosystème marin côtier (estuaire) de la Laguna de los Patos (10º25'50''N, 64º 12'11''O, 2 m d'altitude), sur la rive ouest de la ville de Cumaná et à l'ouest du Río Manzanares. Par ailleurs, il a identifié des spécimens de cette espèce capturés entre 1935 et 1937 en même temps que *Poecilia reticulata*. Les travaux menés par des chercheurs nationaux dans ce système marin côtier au cours des années 1960 et 1970 ne mentionnaient que des sous-populations de *Poecilia reticulata* (Carvajal 1965, Aguilera et Carvajal 1976) ; or, comme le souligne Endler (2011), celles-ci pourraient également être considérées comme appartenant à l'espèce *P. wingei*. Ces dernières années (2014-2017), Salazar et al. (2019) ont signalé la présence de *P. wingei* dans ce système, sans toutefois en préciser les localités exactes.
Par ailleurs, *P. wingei* n'a été relevée dans aucun des inventaires ichtyologiques antérieurs ou récents du Río Manzanares ; seule *P. reticulata* y a été signalée (Aguilera et Carvajal 1976, Pérez et al. 2003, Ruíz et al. 2005, Salazar et al. 2018, Salazar et Arcia-Barreto 2020). Toutefois, ces dernières années, nous avons identifié des sous-populations de *P. wingei* dans le système marin côtier de la Laguna de Punta Delgada (10º27'51''N, 64º06'20''O, 2 m d'altitude), situé à l'embouchure du canal artificiel (déversoir) du Río Manzanares, dans le secteur nord-est de la ville de Cumaná. Par ailleurs, depuis au moins 2015, nous avons constaté la prolifération de sous-populations de *P. wingei* dans divers canaux de collecte des eaux pluviales, situés dans plusieurs rues et avenues de la zone urbaine de Cumaná (10º28'06''N, 64º11'02''O, 6 m d'altitude) et exposés à des débordements d'eaux usées provenant du réseau d'assainissement public.
Malheureusement, l'examen des collections vénézuéliennes (MBUCV, MHNLS, EBRG et MCNG) n'a révélé aucune trace de cette espèce, malgré les divers travaux publiés par des auteurs nationaux (Carvajal 1965, 1972 ; Aguilera et Carvajal 1976 ; Pérez et al. 2003 ; Ruíz et al. 2005 ; Bonilla et al. 2010 ; Salazar et al. 2018, 2019 ; Salazar et Arcia-Barreto 2020).
En conclusion, *Poecilia wingei* a été signalée dans au moins 14 localités de la région nord-est du Venezuela, dans l'État de Sucre. Il est réparti sur cinq écosystèmes correspondant à trois lagunes côtières marines (Playa Grande - El Copey, Los Patos et Punta Delgada) et deux lagunes continentales (Campoma et Buena Vista), lesquelles appartiennent respectivement à trois bassins versants de petite ou moyenne taille : Quebrada Playa Grande, les affluents temporaires de la Laguna de los Patos (Rio Manzanares) et le Rio Campoma-Casanay.

Biotope: Benthopélagique. *Poecilia wingei* vit dans trois systèmes côtiers du nord du Venezuela, dans la région orientale, au sein du bassin de la mer des Caraïbes. C'est l'une des espèces du genre *Poecilia* à aire de répartition restreinte.
Le bassin de sa localité type (bassin du Río Campoma-Casanay) se situe entre le versant sud du massif montagneux de la péninsule d'Araya et le versant nord-est du massif de Turimiquire (Cordillère de la Côte orientale). Il couvre une superficie totale de 1 172 km², répartie entre le système des rivières Campoma et Casanay (507 km²) et son cours supérieur principal, le Río Carinicuao (665 km²) (Salazar et Arcia-Barreto 2020). Selon Carvajal (1972), le Río Campoma s'étend sur 4,5 km et atteint une profondeur maximale de trois à quatre mètres. Dans le cours inférieur ou l'estuaire de cette rivière, il se produit un phénomène d'inversion du sens du courant — la rivière remontant alors vers l'amont — où la salinité peut atteindre 27 ‰ et la température 28,5 °C durant la saison sèche (avril), et ce, jusqu'à au moins 1 600 m en amont de l'embouchure. Ce phénomène résulte d'une seiche — une oscillation du niveau de la mer — qui ne survient que dans le secteur le plus oriental du golfe de Cariaco, là où se jette le Río Campoma (Carvajal 1972).
Les étendues d'eau courante les plus importantes de ce bassin sont les lagunes de Campoma et de Buena Vista ; elles couvrent respectivement 13,25 km² et 37,88 km² et sont situées dans des zones de basse altitude (< 10 m au-dessus du niveau de la mer) caractérisées par des sols gorgés d'eau et une végétation aquatique abondante, tant flottante qu'enracinée (*Paspalum vaginatum*, *Typha angustifolia*, *Nymphaea* sp., *Eleocharis guttata*, *Eichhornia crassipes*, *Sagittaria* sp.) (Carvajal 1972). Selon ce dernier auteur, la Laguna de Campoma présente une profondeur constante de 1,75 m tout au long de l'année, tandis que la Laguna Buena Vista connaît une profondeur variable selon la saison : 1 m durant la saison des pluies et 0,70 m durant la saison sèche. En raison de l'abondance de végétation aquatique et de matière organique, les eaux de ces lagunes et rivières arborent une teinte sombre et rougeâtre ; on en déduit que leur pH est acide, ce qui permet de les classer comme des « eaux noires » (*sensu* Sioli 1975). Carvajal (1972) a observé une variation du niveau du Río Buena Vista (ou Río Casanay), passant de 1,8 m en saison des pluies à 0,7 m en saison sèche ; il a alors signalé une mortalité de poissons et de mollusques, conséquence de l'anoxie des eaux et des températures élevées (> 35 °C). Toutefois, à l'heure actuelle, en raison de sécheresses intenses et prolongées, les lagunes de Campoma et de Buena Vista peuvent s'assécher complètement (Salazar et Arcia-Barreto 2020), entraînant une réduction des populations de poissons.
Par ailleurs, *Poecilia wingei* a également été observée en association avec des plans d'eau côtiers, ou lagunes marines côtières (estuaires). Le premier exemple est la Laguna de Los Patos, qui fait l'objet d'études approfondies depuis les années 1960. Située au sud-ouest de l'embouchure principale du Río Manzanares et en bordure de la ville de Cumaná, elle couvre une superficie de 1,5 km² au sein d'une dépression située sous le niveau moyen de la mer, avec une profondeur variant de 0,40 à 1,00 m (Carvajal 1965, Salazar *et al.* 2019). Elle est constituée de plans d'eau interconnectés, bordés en grande partie par des sols marécageux et inondables, et maintient une communication précaire avec la mer par l'intermédiaire d'un canal (Cumaná 2010). La salinité de cette lagune connaît d'importantes fluctuations, allant de 0,4 à 40 ‰ (Carvajal 1965, Leal et Scremin 2011), en raison de l'apport d'eau douce durant la saison des pluies — provenant de canaux de drainage, de systèmes d'irrigation et de quelques cours d'eau se jetant dans la zone — ainsi que des eaux usées de certains secteurs (Márquez et al. 2007). La végétation est principalement constituée d'espèces de mangroves (*Avicennia germinans*, *Rhizophora mangle* et quelques individus de *Conocarpus erectus* et *Laguncularia racemosa*), typiques de ces estuaires soumis à une influence marine la majeure partie de l'année (Cumaná 2010). Par ailleurs, la lagune de Punta Delgada est située sur la rive gauche de l'embouchure du canal de décharge du Río Manzanares, à une altitude inférieure à deux mètres et sur la rive nord-est de la ville de Cumaná. Elle couvre une superficie de 123,72 hectares, répartie entre la lagune proprement dite et la plaine marécageuse colonisée par une végétation arbustive et des mangroves ; ses eaux présentent une salinité variant de 0 à 37 ‰ (Bello et al. 2020). Enfin, il y a le complexe lagunaire Playa Grande - El Copey. On ignore s'il a fait l'objet d'études, car aucune publication, aucun rapport académique ou technique concernant sa biodiversité n'a été trouvé. Il est formé de deux lagunes : El Copey à l'ouest, d'une superficie de 39,95 ha, et Playa Grande à l'est, d'une superficie de 77,30 ha. Ce complexe présente probablement une forte salinité en raison du faible apport en eau de la région.
La présence de cette espèce dans divers canaux de collecte des eaux pluviales, situés dans plusieurs rues et avenues de la zone urbaine de Cumaná, est préoccupante. L'espèce est exposée aux eaux usées débordant du réseau d'assainissement public, ce qui témoigne de sa grande tolérance à des eaux caractérisées par une faible teneur en oxygène dissous, des températures élevées et une forte concentration de matière organique en décomposition. ...matière organique d'origine urbaine. La grande capacité d'adaptation et la tolérance des Poeciliidae à des conditions environnementales extrêmes sont bien connues, notamment chez leur espèce sœur, *Poecilia reticulata* ; celle-ci peut survivre dans des eaux pauvres en oxygène dissous, présentant des pH très acides ou très alcalins, ainsi que des températures élevées (Meffe et Snelson 1989). Cette espèce possède également une forte capacité de prolifération dans des environnements hostiles ou anthropisés ; elle est, par conséquent, un indicateur de mauvaise qualité de l'eau (Fagundes et al. 2015). Une consommation importante de matière organique (> 80 % du volume alimentaire) — issue de rejets humains — a été observée chez des sous-populations introduites de *P. reticulata* dans des cours d'eau urbains (Reis de Carvalho et al. 2019) ; dans ces milieux, l'espèce peut dominer le peuplement ichtyologique local en termes d'abondance (> 90 %) et supplanter les espèces indigènes (Cruz et Pompeu 2020).
En ce qui concerne l'habitat et l'utilisation de l'écosystème, *Poecilia wingei* — bien qu'on puisse le rencontrer dans de petits cours d'eau naturels ainsi que dans des milieux anthropisés tels que les canaux d'irrigation agricole ou les réseaux d'évacuation des eaux usées en zone urbaine — marque une préférence pour les eaux calmes des écosystèmes lentiques (lagunes d'eau douce continentales) et, semble-t-il, des écosystèmes estuariens (lagunes côtières). Dans ce dernier cas, il s'agit d'environnements à forte salinité, pouvant dépasser celle de l'eau de mer adjacente (> 37 ‰). Toutefois, sa tolérance réelle à la salinité n'a pas encore fait l'objet d'études.
L'absence de *Poecilia wingei* dans d'autres systèmes fluviaux côtiers du nord du Venezuela — adjacents aux sous-bassins des rivières Campoma-Casanay et Manzanares ainsi qu'aux lagunes de Los Patos et de Playa Grande - El Copey — attire notre attention. Il s'agit, à l'ouest, des sous-bassins des rivières Aragua et Nerverí ainsi que du Río Unare et, à l'est, du bassin des cours d'eau se jetant dans le golfe de Paria ; la biodiversité de ces zones a été étudiée des années 1960 jusqu'à une période récente (il y a au moins dix ans), sans que *P. wingei* ou une espèce aux caractéristiques similaires n'ait été recensée au sein de leur ichtyofaune (Mago 1965, Fernández-Yépez 1970, Herrera et López 1997, Marín 2000, Mago et Marín 2004, Rodríguez-Olarte et al. 2009, Lasso et al. 2010).
En ce qui concerne sa répartition altitudinale, l'espèce est présente depuis le niveau de la mer jusqu'à au moins 133 m d'altitude dans le Río Casanare (Bonilla et al. 2010). Toutefois, il existe un signalement à 163 m d'altitude dans un cours d'eau de montagne (Bonilla et al. 2010) que nous jugeons douteux, compte tenu des préférences de l'espèce pour les écosystèmes côtiers de basse altitude. Par ailleurs, les auteurs cités n'ont déposé aucun spécimen dans des collections muséales que nous pourrions examiner pour vérifier cette identification et cet enregistrement.
Sympatrie:
Décors: Plantation dense.
Substrat:
Éclairage: Modéré à intense.
Brassage: Nul à modéré.
Températures optimales: 24 à 30°C.
Mode de vie sociale: Hiérarchie entre mâle. Harem.
Comportement: Actif.
Taille adulte:
Alimentation:
Statut de protection: Menacé.

Menaces: *Poecilia wingei* est fortement menacé, directement et indirectement, par plusieurs facteurs, notamment l'hybridation, l'exploitation à des fins ornementales, l'introduction d'espèces exotiques, l'altération de l'habitat, la pollution de l'eau et le changement climatique. Ces facteurs sont les plus fréquemment observés dans les réseaux hydrographiques du Venezuela (Rodríguez-Olarte *et al.* 2019). Toutefois, chacun de ces facteurs doit faire l'objet d'une étude approfondie afin de déterminer son impact sur les sous-populations de cette espèce.
L'exploitation ou le prélèvement de spécimens dans le milieu naturel, destinés au marché de l'aquariophilie, est détaillé dans la section « Utilisation et commerce ». Cependant, cette activité étant exercée illégalement, sans aucune forme de surveillance ou de contrôle, nous considérons qu'elle constitue une menace majeure pour l'espèce.
L'hybridation de *Poecilia wingei* avec son espèce sœur *P. reticulata* — phénomène décrit par Endler (2011) dans le système lagunaire de Los Patos — représente une menace très préoccupante. Cette situation entraîne une perte, une érosion ou une altération du patrimoine génétique, phénomènes supposés s'être produits par le passé et se poursuivant actuellement au sein des populations peuplant ce système lagunaire, qui subit par ailleurs d'autres problèmes (voir ci-dessous). C'est probablement pour cette raison que Herdeguen *et al.* (2014) ont conclu que *Poecilia wingei* ne présentait pas de différence génétique avec *P. reticulata*. D'autres auteurs sont parvenus à la même conclusion (absence de différenciation génétique entre *Poecilia wingei* et *P. reticulata*) (Alexander et Breden 2004, Alexander *et al.* 2006, Ward *et al.* 2008, Tripathi *et al.* 2009a,b, Watson *et al.* 2010) ; ils désignent donc sous le nom de « guppy de Cumaná » aussi bien les sous-populations présentes dans les écosystèmes aquatiques adjacents ou proches de la ville de Cumaná que celles du bassin du Río Campoma-Casanay (localité type de *P. wingei*). Ce problème d'hybridation pourrait toucher l'ensemble de l'aire de répartition de *P. wingei*, compte tenu des déplacements et des introductions d'espèces par l'homme, comme nous l'expliquons ci-dessous. Quoi qu'il en soit, l'avenir génétique de cette espèce demeure incertain. Les sous-bassins des cours d'eau se jetant dans la mer des Caraïbes au Venezuela sont ceux qui comptent le plus grand nombre d'espèces introduites, avec au moins 10 espèces exotiques (originaires d'autres continents ou pays) et 22 espèces transférées (issues de transferts et d'introductions entre les bassins vénézuéliens) (Lasso-Alcalá 2001, 2003, 2013). La principale espèce exotique introduite dans l'aire de répartition de *Poecilia wingei* est le tilapia du Mozambique (*Oreochromis mossambicus*), dont la présence entraîne diverses conséquences compte tenu des caractéristiques biologiques et écologiques de ce cichlidé. Ces caractéristiques incluent notamment un régime prédateur piscivore, une fécondité modérée mais accompagnée d'importants soins parentaux envers les œufs et les jeunes (comportement territorial), ainsi qu'une croissance démographique rapide ; autant de facteurs rendant imprévisibles les conséquences écologiques de l'introduction de ces poissons (Lasso-Alcalá et al. 2014). Parmi ces conséquences figurent la prédation directe, la compétition interspécifique, le déplacement ou l'extinction d'espèces indigènes, des modifications de la composition spécifique et de la structure trophique, ainsi qu'une perte de biodiversité au sein de l'écosystème ; c'est pourquoi *Oreochromis mossambicus* figure sur la liste des 100 espèces exotiques les plus nuisibles au monde (Lowe et al. 2004). Cette espèce a été introduite dans le système de la Laguna de Los Patos en 1964 à des fins d'élevage expérimental (Khandker 1964, Carvajal 1965, Luengo 1970). Douze ans après cette introduction, on a constaté la disparition ou le déplacement de 74 % des espèces de poissons auparavant recensées dans cet écosystème littoral (Aguilera et Carvajal 1976, Jiménez 1977). Depuis la Laguna de los Patos, où elle est toujours présente (Salazar et al. 2019), cette espèce s'est rapidement dispersée et a envahi les côtes du golfe de Cariaco, grâce à sa grande tolérance à la salinité (Philippart et Ruwet 1982, Trewavas 1982, Pullin 1988) — incluant la capacité de croître et de se reproduire à 35 ‰ et de survivre jusqu'à 120 ‰ (Brock 1954, Dial et Wainright 1983, Stickney 1986, Nico et Neilson 2020). Dans le bassin du Río Manzanares, elle a colonisé le cours d'eau depuis l'embouchure jusqu'au secteur médian (Nirchio et Pérez 2002, Pérez et al. 2003, Senior et al. 2004, Ruíz et al. 2005, Salazar et al. 2018, Salazar et Arcia-Barreto 2020), ainsi que les réseaux de collecte des eaux pluviales et des eaux usées de la ville de Cumaná, où vit également *P. wingei*. De même, sa présence a été signalée dans le bassin du Río Campoma-Casanay (Bonilla et al. 2010), et les auteurs de la présente évaluation l'ont capturée dans la Laguna de Punta Delgada ainsi que dans le système marin côtier des lagunes de Playa Grande et d'El Copey (données non publiées).
D'autres espèces introduites, issues de transferts, ont également été recensées dans l'aire de répartition de *Poecilia wingei*. Il s'agit, dans ce cas, de deux espèces de Cichlidés originaires du Venezuela, mais présentant des caractéristiques biologiques et écologiques — ainsi qu'un impact sur les espèces indigènes — comparables à celles d'espèces exotiques. La Mojarra de Río ou San Pedro, Caquetaia kraussii, est une espèce indigène du bassin du Lago de Maracaibo et, apparemment, du bassin côtier du Río Tuy, qui a été introduite dans les bassins du Golfe de Paria, de l'Orénoque, de l'Unare et du Lago de Valencia, envahissant rapidement ces systèmes (Royero et Lasso 1992, Senaris et Lasso 1993, Rodriguez-Olarte et al. 2011, Pérez et coll. Il est considéré comme l'équivalent écologique du tilapia noir Oreochromis mossambicus en termes d'impact sur la faune indigène (Señaris et Lasso, 1993). Il a été enregistré dans les bassins des rivières Campoma-Casanay (Boniilla et al. 2010), Manzanares (Senior et al. 2004, Salazar et al. 2018, Salazar et Arcia-Barreto 2020), du système Laguna de Los Patos (Salazar et al. 2019) et récemment dans la Laguna de Punta Delgada (données non publiées). Pour sa part, le Mataguaro Crenicichla geayi, originaire du bassin du Río Orinoco et des bassins côtiers de l'Aroa, du Yaracuy et du RíoTuy (Lasso et Machado-Allison 2000, Lasso et al. 2003, Rodriguez-Olarte et al. 2011), a été enregistré comme introduit dans le bassin du Río Manzanares (Senior et al. 2004; Salazar et al. 2007, 2018) et Río Campoma-Casanay (Boniilla et al. 2010). Par ailleurs, dans ce dernier bassin, entre les localités de Casanay et de Pantoño, se trouve un complexe de loisirs aménagé par l'homme (centre thermal) relié à ce bassin ; on y a observé la présence d' *O. mossambicus* et d'autres espèces de Cichlidés exotiques (par exemple *Thorichthys meeki*), dont l'identification précise, la répartition et l'impact sur les espèces indigènes nécessitent des études approfondies. Quoi qu'il en soit, ces espèces introduites déjà identifiées, conjuguées à plus de 30 espèces carnivores indigènes, pourraient entraîner une réduction significative, voire l'extinction locale, des populations de *Poecilia wingei*.
L'altération de l'habitat constitue également un facteur majeur susceptible de nuire à la survie des sous-populations de *Poecilia wingei*. Les systèmes lagunaires de Los Patos et de Punta Delgada sont isolés du Río Manzanares depuis les années 1970. Si Carvajal (1965) mentionne une communication entre ces systèmes et le cours inférieur ainsi que l'estuaire du Río Manzanares, les travaux de Pérez *et al.* (2003), Senior *et al.* (2004) et Ruíz *et al.* (2005) ne font plus état d'une telle connexion. De même, selon nos observations et celles d'autres auteurs (Arbuatti 2007, Salazar *et al.* 2018), de vastes zones de ces lagunes ont été comblées pour gagner ou étendre des terrains, lesquels ont ensuite été urbanisés en raison de la croissance démographique de la ville de Cumaná. Ces zones, ainsi que les abords des lagunes, ont été investies par des populations disposant de faibles ressources économiques et vivant dans des logements précaires. Ces installations humaines ont, à leur tour, un impact sur les mangroves — notamment par la coupe de bois de chauffage à usage domestique (pour la cuisson des aliments) — dans un contexte de détérioration économique et sociale du pays au cours des vingt dernières années. Pérez *et al.* (2003) ont observé l'assèchement total ou partiel du système lagunaire de Los Patos durant la saison sèche (avril-mai) de 2001, une situation qui a perduré ces dernières années. La raréfaction croissante de l'apport en eau dans ces systèmes lagunaires a entraîné une augmentation de la salinité (jusqu'à 40 ‰) sur des périodes plus longues de l'année (jusqu'à sept mois) ainsi qu'une colonisation par des espèces marines et estuariennes, comme le montrent les comparaisons entre les travaux de Carvajal (1965 : 21 espèces) et ceux de Pérez et al. (2003 : 16 espèces) et Salazar et al. (2019 : 33 espèces). Parallèlement, on a observé une augmentation du nombre de prédateurs (> 30 espèces), susceptibles de réduire davantage les sous-populations de *P. wingei*. Une autre altération de l'habitat propre à ces systèmes lagunaires réside dans la présence de stations d'épuration des eaux usées de la ville de Cumaná, construites au sein même des lagunes. Une autre modification de l'habitat est liée à la construction, en 1972, d'un canal de dérivation (déversoir) du Río Manzanares destiné à prévenir les inondations (Salazar et al. 2018) ; ce canal se déverse sur la rive droite de la Laguna Punta Delgada. Comme on peut le constater, *P. wingei* peuple actuellement des systèmes dont l'état diffère considérablement des conditions initiales ou naturelles. Ces lagunes sont également exposées à un risque d'isolement par rapport à la mer adjacente, dû à la fermeture de leurs embouchures provoquée par la sédimentation de matériaux terrigènes sur le littoral. Dans le bassin du Río Manzanares, de mauvaises pratiques agricoles (déboisement, brûlis, pâturage), conjuguées à l'extraction de matériaux non métalliques (gravier et sable), entraînent une érosion excessive des sols et un transport sédimentaire très important (Senior et al. 2004, 2005 ; Salazar et al. 2018). Selon ces auteurs, le canal de dérivation du Río Manzanares et son embouchure naturelle, combinés à la direction des courants marins dominants, favorisent la modification du littoral ; la capacité de transport est liée au débit élevé et à la capacité d'entraînement des sédiments du Río Manzanares. À cet égard, Medina et al. (2013) ont établi que le Río Manzanares transportait vers le littoral de Cumaná ...où se trouvent les lagunes de Los Patos et de Punta Delgada), soit un volume total moyen de 874 823 208 m³/an d'eau.
Dans le bassin du Río Campoma-Casanay, les prélèvements d'eau à usage urbain et agricole, ainsi que la pratique de l'agriculture sur brûlis (visant à étendre les terres arables au détriment des forêts du bassin), sont très répandus ; c'est dans ce contexte que *Poecilia wingei* a colonisé certains réseaux de canaux d'irrigation (Poeser et al. 2005). Selon certaines sources (MARNR 1995, 2005), plusieurs facteurs ont un impact significatif dans ce bassin, notamment l'agriculture itinérante (système des *conucos*) et les cultures de subsistance associées à la déforestation des derniers vestiges forestiers, pratiquées sans mesures de protection des sols. Dans les zones de plaine, la culture de la canne à sucre prédomine ; cette monoculture, jugée problématique pour la région, occupe 70 % de la surface totale. Les conflits d'usage des terres ont conduit à l'exploitation des bassins versants pour des cultures à cycle court, empêchant ainsi le développement de successions végétales secondaires (Salazar et Arcia-Barreto 2020). Par ailleurs, on observe un pompage continu dans les aquifères du bassin pour alimenter plus de 30 complexes de loisirs privés (sources thermales) de petite et moyenne taille, dont l'impact environnemental n'a pas été évalué. Il en résulte une salinisation et une dégradation manifeste de l'environnement dans ce bassin. Actuellement, le déficit hydrique causé par de mauvaises pratiques agricoles et d'autres prélèvements d'eau, conjugué à des sécheresses intenses et prolongées, entraîne l'assèchement complet des lagunes de Campoma et de Buena Vista (Salazar et Arcia-Barreto 2020), provoquant une réduction, voire l'extinction locale, des populations de poissons. Dans l'un des principaux affluents situés au sud de ce bassin (le Río Caraico-Carinicuao), l'érosion des sols est très marquée ; cette situation résulte de la fréquence élevée des incendies dans la forêt originelle du versant nord-est du massif du Turimiquire — où se trouve ce réseau hydrographique — ainsi que des mauvaises pratiques agricoles liées à l'agriculture itinérante (déforestation pour créer des *conucos*). Les apports importants de matière organique ainsi que les fortes proportions de sable et de limon provenant du Río Cariaco-Carinicuao ont été associés aux polluants métalliques détectés dans le secteur le plus oriental du golfe de Cariaco (Salazar et Arcia-Barreto 2020). En comparant les résultats des inventaires ichtyologiques réalisés en 1969-1970 (Carvajal 1972 : 33 espèces) et en 2009 (Bonilla et al. 2010 : 16 espèces), on observe une réduction ou une perte de diversité estimée à 49 % des espèces.
La contamination des eaux des écosystèmes aquatiques où vit *Poecilia wingei* est marquée, compte tenu de la proximité de grands centres urbains comme la ville de Cumaná — qui compte plus de 680 000 habitants, pour ne citer qu'un exemple. Les stations d'épuration de Cumaná rejettent des eaux insuffisamment traitées dans les lagunes de Los Patos et de Punta Delgada. De même, les communautés riveraines de ces lagunes y déversent également leurs eaux usées directement (Salazar et al. 2019). La lagune de Los Patos présente un degré élevé d'eutrophisation (NT : 538,08 µmol/l ; NO₃ : 330,05 µmol/l ; NH₄⁺ : 224,42 µmol/l ; PO₄ : 31,40 µmol/l ; PT : 62,75 µmol/l), en particulier durant la saison des pluies, période où les apports d'eaux usées sont plus importants (Torcatt 2015). Par ailleurs, des concentrations élevées de métaux lourds ont été détectées dans les eaux de cette lagune ainsi que chez des espèces de poissons présentant des caractéristiques écologiques similaires à celles de *P. wingei* (Toledo et al.). (2000) ont relevé des concentrations maximales dans l'eau pour les métaux Cu (11,6 ml/l), Cd (5,5 ml/l) et Pb (29,5 ml/l), ainsi qu'une accumulation bien plus élevée (Cu 100,7 μg/g, Cd 33,8 μg/g et Pb 138,5 μg/g) dans les tissus de l'espèce *Cyprinodon dearborni*. Dans le bassin du Río Campoma, la contamination par des produits agrochimiques largement utilisés dans l'agriculture locale et par les eaux usées des localités de Cariaco, Casanay, Pantoño, Campoma, Río Casanay, Guarapiche et quinze autres plus petites est également notable ; quant aux lagunes de Playa Grande et d'El Copey, elles présentent à l'œil nu un degré élevé d'eutrophisation (eaux vert foncé) du fait qu'elles reçoivent les eaux usées des villes côtières de Playa Grande et Copacabana. Par ailleurs, une grande partie des polluants urbains et industriels ainsi que des eaux usées générés le long du bassin du Río Manzanares finissent dans ce cours d'eau sans aucun traitement (Senior et al. 2004, 2005). Parmi les produits agrochimiques utilisés dans le bassin du Manzanares, on peut citer le glyphosate (herbicide) (Salazar et al. 2018), qui a provoqué un stress cellulaire, la mortalité d'individus, des mutations, une perte de diversité et des dommages génétiques au sein des populations de l'espèce indigène *Ancistrus brevifilis* (Lárez et Alfonsi 2011), pour ne citer qu'un exemple.
De manière générale, les rivières prenant leur source dans les différents systèmes orographiques du nord du Venezuela présentent un état de conservation allant de passable à mauvais, en particulier celles qui se jettent dans la mer des Caraïbes, à l'exception des bassins supérieurs des rivières de la Cordillère de la Côte (*Cordillera de la Costa*) (Blanco et al. 2015 ; Rodríguez-Olarte et al. 2008, 2019 ; Martínez 2020). Toutefois, ...dans les secteurs amont de ces sous-bassins, la diversité ichtyologique est très faible.
Enfin, il convient de souligner que le changement climatique constitue également une menace importante pour la survie de cette espèce. D'une part, sa répartition à basse altitude (0 à 133 m au-dessus du niveau de la mer) et sa grande proximité avec la côte l'exposent à un risque élevé lié à l'élévation du niveau de la mer. D'autre part, nous avons déjà évoqué la fréquence croissante, au cours des vingt dernières années, de l'assèchement total ou partiel des lagunes de Las Patos, Campoma et Buena Vista durant la saison sèche (Pérez et al. 2003, Salazar et Arcia-Barreto 2020). Selon Paredes-Trejo et al. (2020), les variations pluviométriques affectent le régime hydrologique saisonnier des cours d'eau, car elles sont susceptibles d'entraîner des répercussions complexes sur les écosystèmes fluviaux et leur ichtyofaune. En raison de la réduction excessive du débit des rivières durant la saison sèche, les poissons sont davantage exposés à la surpêche ainsi qu'aux pesticides et polluants en général (Winemiller et al. 1996). De même, la variabilité climatique (qu'elle soit induite ou non par le réchauffement planétaire) peut modifier le régime hydrologique des cours d'eau (au moins temporairement), compromettant ainsi l'intégrité et le fonctionnement des écosystèmes et entraînant leur dégradation. Par conséquent, la survenue d'années marquées par un déficit ou un excédent hydrique sévère, conjuguée à la surexploitation des ressources hydrobiologiques et à la pollution des cours d'eau, peut nuire à leur état de conservation (Silva et al. 2016). En outre, on peut supposer que les habitats et le biote des bassins versants confrontés à des précipitations excessives ou déficitaires ne seront pas en mesure d'évoluer assez rapidement pour s'adapter à ces changements (Paredes-Trejo et al. 2020). En conclusion, ces auteurs suggèrent que si cette situation perdure, il est nécessaire de mettre en place des mesures de protection spécifiques pour les régions les plus touchées — identifiées comme des « points chauds » (hotspots) — afin de garantir la préservation des bassins hydrographiques menacés par la variabilité climatique, qu'elle soit ou non induite par le réchauffement planétaire.
Étymologie:
Cycle de vie:
Longévité:
Notes:
Informations sur l'espèce: Cette espèce a été initialement distinguée comme une forme nouvelle par le Dr John A. Endler. En 1975, lors de ses travaux de terrain au Venezuela et sur l'île de la Trinité — menés pour étudier divers aspects de la sélection naturelle chez *Poecilia reticulata* (voir Endler 1978, 1980, 1983, entre autres) —, Endler a collecté des spécimens de cette nouvelle forme dans la Laguna de Los Patos, près de la ville de Cumaná (État de Sucre, Venezuela). Ces spécimens, conservés ou vivants, ont été rapportés aux États-Unis et confiés au Dr Donn E. Rosen (AMNH) pour étude et description, ainsi qu'au Dr Klaus Kallman pour leur reproduction. Bien que le Dr Rosen n'ait pas pu décrire l'espèce en raison de son décès, le Dr Kallman a pris l'initiative de la distribuer à de nombreux éleveurs de poissons d'ornement à travers le monde ; ainsi, cette espèce non encore décrite a commencé à être commercialisée et connue sous les noms de « Endler's Livebearer » ou « Endler's Guppy » dès les années 1970 (Endler 2011).
L'espèce a été décrite sous le nom de *Poecilia wingei* par Poeser, Kempkes et Isbrücker (2005), à partir de spécimens capturés en 2002 dans le réseau hydrographique des lagunes de Campoma et de Buena Vista (État de Sucre, Venezuela), ainsi que dans de petits cours d'eau côtiers voisins.
*Poecilia wingei* est actuellement une espèce valide, considérée comme l'espèce sœur de *P. reticulata* (Morris et al. 2018). Depuis sa description, cette espèce n'a fait l'objet d'aucune modification de nomenclature ni de reclassement générique.
Il convient toutefois de noter que Herdeguen et al. (2014) ne considèrent pas *Poecilia wingei* comme une espèce valide ou distincte de *Poecilia reticulata*, faute de preuves génétiques suffisantes pour séparer ou différencier ces deux espèces. D'autres auteurs (Alexander et Breden 2004, Alexander et al. 2006, Ward et al. 2008, Tripathi et al. 2009a, b, Watson et al. 2010) ne considèrent pas *P. wingei* comme une espèce valide ; ils reconnaissent toutefois les populations de *Poecilia reticulata* du nord-est du Venezuela — présentes dans les écosystèmes aquatiques adjacents et proches de la ville de Cumaná ainsi que dans le bassin du Río Campoma (qu'ils désignent sous le nom de « guppy de Cumaná ») — comme un cas de spéciation naissante (Alexander et Breden 2004, Herdeguen et al. 2014). Selon Huber (2019), *P. wingei* est une « espèce moléculaire » typique, impossible à diagnostiquer sur la base d'un motif ou d'une combinaison de caractères externes.
Informations sur le genre: Une troisième espèce distincte de « guppy », *Poecilia (Acanthophacelus) obscura*, est décrite à partir de spécimens provenant de Trinité (Schories *et al.*, 2009). Schories *et al.* proposent de classer ces trois espèces de « guppy » dans le sous-genre *Acanthophacelus*, considéré comme génériquement distinct de tous les autres taxons de la sous-famille des Poeciliinae.
Sous-famille: Poeciliinae.
Information sur la famille: Poeciliidae.
Ordre: Cyprinodontiformes.
Sources:


*SL: Standard lenght, Taille standard, la mesure n'inclue pas la nageoire caudale. C'est la mesure la plus couramment utilisée dans les papiers scientifiques. c'est aussi la mesure utilisée par les grossistes pour les espèces voilées, les scalaires et les discus.
*TL: Totale lenght, taille totale comprenant la nageoire caudale.

Fiche technique
Vous aimerez aussi
Poecilia wingei "Cumana"